




Shaanxi BLOOM Tech Co., Ltd. is een van de meest ervaren fabrikanten en leveranciers van n(4)-hydroxycytidine in China. Welkom bij de groothandel in hoogwaardige n(4)-hydroxycytidine die hier in onze fabriek te koop is. Goede service en een redelijke prijs zijn beschikbaar.
N(4)-hydroxycytidine(Engagliflozine, -D-N⁴-hydroxycytidine, codenaam EIDD-1931) is een synthetisch pyrimidine-ribonucleoside-analoog. Het fungeert als de belangrijkste actieve metaboliet van molnupiravir, een antiviraal middel met een breed-spectrum, met CAS-registratienummer 3258-02-4. De chemische structuur ervan vertoont grote gelijkenis met natuurlijk cytidine en verschilt alleen door een hydroxylmodificatie bevestigd aan de aminogroep op de 4-positie van de pyrimidinering; dit onderscheidende structurele kenmerk ondersteunt de antivirale activiteit ervan. Het vertoont een verwaarloosbare cytotoxiciteit, uitstekende wateroplosbaarheid en cellulaire permeabiliteit, en oefent effecten uit tegen een breed spectrum van RNA-virussen. Momenteel fungeert Engagliflozine niet alleen als een belangrijk leidend bestanddeel voor de ontdekking van nieuwe antivirale geneesmiddelen, maar ook als een belangrijk moleculair hulpmiddel voor onderzoek naar virusgemedieerde replicatiemechanismen en antivirale farmacologie.
Ons productenformulier



N(4)-hydroxycytidineCOA
 |
||
| Certificaat van analyse | ||
| Samengestelde naam | N(4)-hydroxycytidine | |
| Cijfer | Farmaceutische kwaliteit | |
| CAS-nr. | 3258-02-4 | |
| Hoeveelheid | 56g | |
| Verpakking standaard | PE zak+Al-foliezak | |
| Fabrikant | Shaanxi BLOOM TECH Co., Ltd | |
| Kavelnr. | 202601090056 | |
| MFG | 9 januari 2026 | |
| EXP | 8 januari 2029 | |
| Structuur |
|
|
| Item | Enterprise-standaard | Analyseresultaat |
| Verschijning | Wit of bijna wit poeder | Conform |
| Watergehalte | Minder dan of gelijk aan 5,0% | 0.45% |
| Verlies bij drogen | Minder dan of gelijk aan 1,0% | 0.19% |
| Zware metalen | Pb Minder dan of gelijk aan 0,5 ppm | N.D. |
| Als Minder dan of gelijk aan 0,5 ppm | N.D. | |
| Hg Minder dan of gelijk aan 0,5 ppm | N.D. | |
| Cd Minder dan of gelijk aan 0,5 ppm | N.D. | |
| Zuiverheid (HPLC) | Groter dan of gelijk aan 99,0% | 99.98% |
| Enkele onzuiverheid | <0.8% | 0.57% |
| Totaal aantal microben | Minder dan of gelijk aan 750 cfu/g | 600 |
| E. Coli | Minder dan of gelijk aan 2 MPN/g | N.D. |
| Salmonella | N.D. | N.D. |
| Ethanol (door GC) | Minder dan of gelijk aan 5000 ppm | 750 ppm |
| Opslag | Bewaren op een afgesloten, donkere en droge plaats onder -20 graden | |
|
|
||
|
|
||

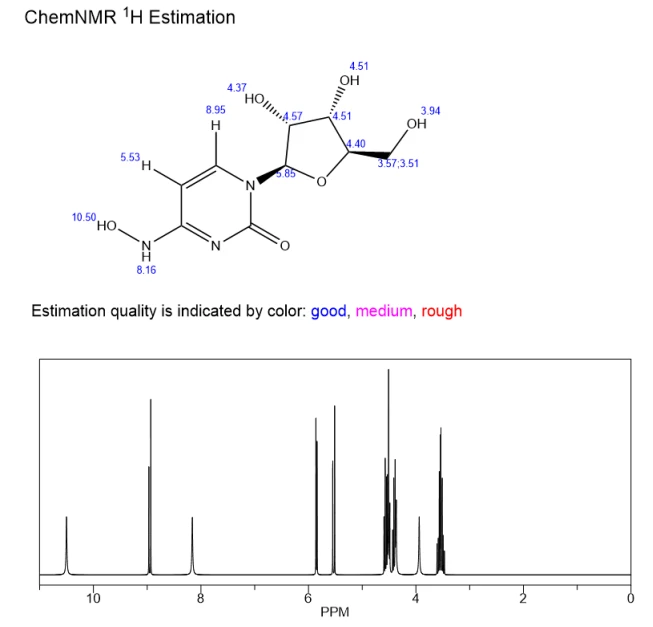

| Chemische formule | C9H13N3O6 |
| Exacte massa | 259.08 |
| Moleculair gewicht | 259.22 |
| m/z | 259.08 (100.0%), 260.08 (9.7%), 261.08 (1.2%) |
| Elementaire analyse | C, 41.70; H, 5.06; N, 16.21; O, 37.03 |

Mechanisme van actie
Intracellulaire activering en metabolische route
De voorwaarde voorN(4)-hydroxycytidineHet uitoefenen van antivirale effecten ligt in stapsgewijze fosforyleringsactivatie, gemedieerd door de cellulaire metabolische machinerie van de gastheer. Het vrije oudermolecuul van engagliflozine vertoont geen antivirale activiteit en functioneert slechts als een specifieke prodrug die de virus-gemedieerde replicatie niet rechtstreeks kan verstoren. Nadat engagliflozine via passieve diffusie gecombineerd met nucleosidetransporteiwitten op celmembranen het cytoplasma van de gastheer is binnengedrongen, ondergaat het onmiddellijk een fosforylatiemodificatie in meerdere- fasen. Dit activeringsproces is volledig afhankelijk van endogene menselijke nucleosidekinasen en fosfokinasen, onafhankelijk van virus-geassocieerde hulpeiwitten die door virussen worden gecodeerd.


Deze eigenschap maakt het mogelijk dat engagliflozine zich kan aanpassen aan de intracellulaire micro-omgeving van cellen die zijn geïnfecteerd door alle RNA-virussen, wat een belangrijke basis vormt voor het brede antivirale profiel van het -spectrum. Ten eerste katalyseren gastheerthymidinekinase en uridinekinase de initiële monofosforylering van engagliflozine om N⁴- hydroxycytidinemonofosfaat (NHC- MP) te genereren, waardoor een voorlopige moleculaire activering wordt bewerkstelligd. Daaropvolgende continue katalyse door cytoplasmatische fosfotransferasen zet NHC-MP opeenvolgend om in het difosfaattussenproduct (NHC-DP), en levert uiteindelijk biologisch actief N⁴-hydroxycytidinetrifosfaat (NHC-TP) op.
NHC-TP deelt een zeer homologe ruimtelijke conformatie met endogeen menselijk cytidinetrifosfaat, waarbij de moleculaire afmetingen, ladingsverdeling en substraatbindende eigenschappen goed overeenkomen met de actieve plaats van virus-geassocieerd RNA-afhankelijk RNA-polymerase (RdRp).
Het kan nauwkeurig worden herkend en opgevangen door RdRp van verschillende RNA-virussen en worden opgenomen als een afwijkend substraat in opkomende virus-geassocieerde RNA-strengen. NHC-TP heeft met name een extreem lage affiniteit voor gastheercellulaire DNA-polymerasen en canonieke RNA-polymerasen, en neemt nauwelijks deel aan de replicatie van het menselijk genoom en normale transcriptie.


Het richt zich specifiek op virus{0}}geassocieerde RNA-replicatiesystemen, die cytotoxiciteit en verstoringen van de metabolische homeostase van de gastheer fundamenteel vermijden en een veilige basis leggen voor farmaceutische toepassing.
Mechanisme van virus-geassocieerde RNA-opname en mismatch-mutagenese
Tijdens de verlenging van RNA-strengen, gekatalyseerd door virus{0}}geassocieerd RdRp, wordt geactiveerde NHC-TP willekeurig geïntegreerd in het nieuw gesynthetiseerde virus-geassocieerde genomische RNA, waardoor de canonieke base-regels voor basisparing worden verstoord en mismatch-mutagenese van het virus-geassocieerde genoom wordt geïnitieerd.
De hydroxylgroep op de 4--positie van de pyrimidinering van engagliflozine fungeert als het belangrijkste functionele deel, waardoor dynamische keto-enol-tautomerisatie wordt teweeggebracht en het molecuul wordt voorzien van kenmerken die twee basen nabootsen: het keto-tautomeer bootst natuurlijk cytidine na en vormt specifieke basenparen met guanine; het enol-tautomeer bootst uridine na en bindt zich stabiel aan adenine.
Deze unieke tautomere eigenschap zorgt ervoor dat engagliflozine, ingebed in virus{0}}geassocieerde RNA-strengen, een mutagene hotspot wordt voor genoomreplicatie, waardoor voortdurend basisparingstoornissen worden veroorzaakt tijdens daaropvolgende virus-geassocieerde proliferatie en passage.

In de eerste ronde van virus-gemedieerde replicatie vervangt willekeurig geïncorporeerd engagliflozine cytidine in RNA-strengen zonder de RNA-verlenging direct te beëindigen, wat leidt tot verborgen accumulatie van mutaties. In de tweede en daaropvolgende replicatierondes houden RNA-templates die engagliflozine bevatten mismatches in stand, waardoor afwijkende incorporatie van adenine en guanine in nageslachtgenomen wordt geïnduceerd en overvloedige bidirectionele transitiemutaties van C → U en G → A worden gegenereerd. Dergelijke mutaties missen locusspecificiteit en worden willekeurig over het volledige virusgeassocieerde genoom verspreid, waarbij structurele eiwitgenen, replicasegenen, regulerende genen en andere regio's worden gedekt, in plaats van beperkt te zijn tot enkele functionele fragmenten.
Dit schaadt op grote schaal de coderingsintegriteit en genetische stabiliteit van virus-geassocieerde genomen en verstoort fundamenteel de normale virus-geassocieerde proliferatie. Vergeleken met geneesmiddelen die mutaties op één- site induceren, genereert engagliflozine een hogere mutatiedichtheid en een bredere dekking. Virussen kunnen genomische defecten niet compenseren via lokaal genherstel, wat resulteert in een grondigere mutagene interferentie.
Catastrofe-effect van virale fouten
Genoom-brede willekeurige mutaties geïnduceerd door engagliflozine stapelen zich voortdurend op tijdens de passage van seriële virussen-geassocieerd.

Zodra de mutatiebelasting de fouttolerantiedrempel van het-virusgenoom overschrijdt, wordt de klassieke virus-foutcatastrofe geactiveerd, waardoor uiteindelijk de-virusgeassocieerde replicatiecapaciteit wordt afgeschaft.RNA-virussen hebben over het algemeen compacte genomen, een lage replicatiegetrouwheid en ontberen basale excisie- en reparatiesystemen. Hun RdRp ontbeert 3′-5′ exonuclease-proofreading-activiteit en kan base-mismatches veroorzaakt doorN(4)-hydroxycytidine, resulterend in enorme de novo-mutaties in elke replicatiecyclus.
Naarmate de passage vordert, stijgt de mutatielast van virus{0}}geassocieerde genomen exponentieel met de voortdurende superpositie van missense, onzin en frameshift-mutaties, waardoor geleidelijk de genomische functionaliteit en integriteit wordt vernietigd.
Wanneer de accumulatie van mutaties de kritieke drempel bereikt, worden de kernvirus-geassocieerde vitale functies volledig afgeschaft. Aan de ene kant lijden belangrijke functionele eiwitten die worden gecodeerd door virussen (RdRp, helicase, replicatie-cofactoren, enz.) aan verstoorde aminozuursequenties en abnormale vouwing als gevolg van mutaties, waardoor de katalytische activiteit voor virus-geassocieerde genoomreplicatie wordt verloren en de nageslachtvirus-geassocieerde nucleïnezuursynthese wordt geblokkeerd. Aan de andere kant verhindert structurele schade aan virus-geassocieerde envelopeiwitten en nucleocapside-eiwitten de assemblage, ontluiking en rijping van virus-geassocieerde deeltjes, waardoor grote hoeveelheden defectieve virus-geassocieerde deeltjes worden gegenereerd die verstoken zijn van infectiviteit en replicatievermogen.

Deze defectieve virionen kunnen geen nieuwe gastheercellen infecteren; Ondertussen leggen ze geconserveerde virus{0}}geassocieerde antigene epitopen bloot en worden ze gemakkelijker herkend en geëlimineerd door macrofagen en lymfocyten van de gastheer. Bovendien blokkeren genoom--brede- mutaties met een hoge belasting de adaptieve evolutie en resistentieselectieroutes van virussen volledig, waardoor de opkomst van geneesmiddelresistentie via single- virus--geassocieerde mutaties wordt voorkomen. Dit pakt de prominente beperking aan van frequente resistentie geassocieerd met conventionele gerichte antivirale geneesmiddelen en maakt een grondige onderdrukking en klaring van virussen mogelijk.
Mechanisme dat ten grondslag ligt aan de brede- antivirale activiteit in het spectrum
De brede- antivirale activiteit van engagliflozine is afkomstig van het unieke remmingsmechanisme van de genoommutagenese, dat verschilt van traditionele geneesmiddelen die zich richten op afzonderlijke,{1}} virusgeassocieerde eiwitten. Het is effectief tegen de meeste positieve-sense enkel-strengige RNA-virussen, alfavirussen, bunyavirussen, influenzavirussen en andere zeer pathogene RNA-virussen. De proliferatie van alle RNA-virussen is afhankelijk van RdRp-gemedieerde virus-geassocieerde genoomreplicatie en mist basiscontrole- en reparatiemechanismen. Deze gemeenschappelijke eigenschap vormt een universeel antiviraal doelwit voor engagliflozine, waardoor een breed-spectrumeffectiviteit mogelijk wordt zonder aanpassing van het mechanisme voor verschillende virussen.

Voor coronavirussen waaronder SARS-CoV-2 en MERS-CoV remt engagliflozine op effectieve wijze wild--type stammen, evenals varianten zoals Delta en Omicron. Zelfs als spike-eiwitmutaties virus-geassocieerde immuunontduiking mediëren, blijft het kernreplicatiemechanisme onveranderd en kan het NHC-geïnduceerde genomische mutagenese niet ontwijken. engagliflozine onderdrukt ook de replicatie en overdracht van RNA-virussen met een hoog risico, zoals het influenza A-virus, het chikungunya-virus en het Venezolaanse paardenencefalitisvirus, via cumulatieve genomische mutaties. Bovendien vertoont engagliflozine uitstekende gastheercompatibiliteit en lage toxiciteit.
De activerings- en functionele processen richten zich selectief op virus{0}}geassocieerde RNA-replicatie zonder de DNA-replicatie van de gastheer, gentranscriptie en normale eiwitsynthese te verstoren, waardoor minimale toxiciteit aan gezonde gastheerweefsels wordt verleend. Tijdens een virus-geassocieerde infectie vermindert engagliflozine snel de virus-geassocieerde belasting in vivo, verlicht het cytolytische schade veroorzaakt door virussen, onderdrukt het door virussen- de overmatige ontstekingsreactie en apoptose, en biedt het voldoende tijd voor activering van de aangeboren en adaptieve immuniteit om virussen te elimineren. Dit synergetische effect tussen farmacologische remming en immuunklaring verbetert de resultaten van antivirale interventies aanzienlijk.

Momenteel wordt bij de reguliere synthetische route voor het product gebruik gemaakt van goedkoop uridine als uitgangsmateriaal via een klassieke modificatiereactie in vier- stappen, met eenvoudige workflows en een hoge productzuiverheid.
De kernprocedures omvatten hydroxylbescherming, activering van de C4-plaats op de pyrimidinering, nucleofiele substitutie door hydroxylamine en zure deprotectie.
Silylreagentia beschermen ribosylhydroxylgroepen om nevenreacties te voorkomen; sulfonylering activeert de doelplaats om hydroxyaminogroepen te introduceren. Daaropvolgende ontscherming, gecombineerd met herkristallisatie en kolomchromatografiezuivering, levert het eindproduct op.
Dit synthetische proces verloopt onder milde omstandigheden met een sterke regioselectiviteit en stabiele opbrengsten. De zuiverheid van eindproducten kan hoger zijn dan 98%, geschikt voor laboratoriumvoorbereiding en kleinschalige industriële productie-.
Referenties
- BankChem. Een diepgaande technische gids voor -D-N⁴-hydroxycytidine (EIDD-1931)[R/OL].
- Urakova N, et al.. -d-N⁴-hydroxycytidine is een krachtige anti-alfavirusverbinding die een hoog niveau aan mutaties in het virale genoom induceert[J]. Journal of Virology, 2018, 92(24):e01651-17.
- InvivoChem. Technische specificatie en farmacologische activiteit van EIDD-1931 (-d-N⁴-hydroxycytidine; NHC)[EB/OL].
- PMC. Mechanisme van door molnupiravir-geïnduceerde SARS-CoV-2-mutagenese[J]. 2021, 15(10):e0078921.
Populaire tags: n(4)-hydroxycytidine, leveranciers, fabrikanten, fabriek, groothandel, kopen, prijs, bulk, te koop